


Как короткие пептиды попадают в клетки и от чего зависит их путь в организме
Что происходит с белком после еды? Пищеварительные ферменты разрезают длинную белковую цепь на всё более короткие фрагменты. Однако к моменту всасывания часть аминокислот всё ещё соединена попарно или по три. Клетки тонкой кишки способны захватывать такие фрагменты целиком. Для этого на их поверхности есть белок-переносчик, который распознаёт короткий пептид и проводит его через клеточную мембрану.
Для физиологии питания это один из способов усвоения белка. Для пептидной биорегуляции тот же процесс интересен по другой причине. Если две или три аминокислоты входят в клетку вместе, они сохраняют свою последовательность. А именно от последовательности зависят свойства молекулы, в том числе её способность взаимодействовать с другими молекулами в клетке. Поэтому у короткого пептида, который расщепился по пути, и у того же пептида, достигшего клетки в исходном виде, может быть разная биологическая судьба.
Какие переносчики участвуют в этом процессе? Почему в кишечнике и почках они работают по-разному? И может ли строение пептида отчасти объяснить его действие в определённой ткани?
Почему даже очень маленькой молекуле нужен переносчик
Белки и пептиды построены из одних и тех же основных единиц — аминокислот. Когда соединены две аминокислоты, получается дипептид, когда три — трипептид. К ультракоротким относят цепочки всего из нескольких аминокислот. В исследованиях Владимира Хавинсона и коллег рассматриваются последовательности длиной от двух до семи аминокислотных остатков. Наиболее подробно механизмы переноса изучены для ди- и трипептидов [1].
На первый взгляд может показаться, что молекуле такого размера легко попасть внутрь клетки. Но проницаемость клеточной мембраны зависит и от химических свойств вещества. Внутренняя часть мембраны образована липидами. Для молекулы с заряженными группами, которая хорошо взаимодействует с водой, эта среда создаёт препятствие. У коротких пептидов такие группы есть на концах цепи, а у ряда аминокислот — ещё и в боковых частях молекулы.
Преодолеть этот барьер помогают встроенные в мембрану белки. У переносчика есть полость, доступ к которой поочерёдно открывается с разных сторон мембраны. Молекула связывается с белком с одной стороны. Затем белок меняет пространственную форму и высвобождает её с другой. Структуру человеческих пептидных переносчиков удалось изучить в разных состояниях, что позволило исследователям увидеть отдельные этапы этого процесса [2].
Как кишечник всасывает пептиды целиком
Поверхность тонкой кишки покрыта ворсинками. Клетки на их поверхности, энтероциты, в свою очередь, несут множество микроскопических выростов. Вместе они образуют щёточную каёмку — участок, где содержимое кишечника непосредственно соприкасается с всасывающей поверхностью. Именно здесь сосредоточен переносчик PEPT1.
После переваривания пищи у щёточной каёмки оказываются свободные аминокислоты и множество разных коротких цепочек. Для свободных аминокислот существуют собственные системы транспорта. PEPT1 распознаёт широкий круг ди- и трипептидов. Благодаря этому кишечник может усваивать фрагменты самых разных пищевых белков ещё до того, как ферменты разъединят последнюю пару аминокислот [1, 2].
Для переноса PEPT1 использует энергию движения протонов — положительно заряженных ионов водорода. На обращённой в просвет кишки поверхности энтероцита работает белок, который выводит протоны из клетки в обмен на натрий. Так поддерживаются условия, при которых протоны стремятся вернуться внутрь. PEPT1 позволяет протону войти вместе с пептидом. Энергии этого движения достаточно, чтобы клетка продолжала захватывать пептиды даже тогда, когда их концентрация внутри уже выше, чем снаружи [1].
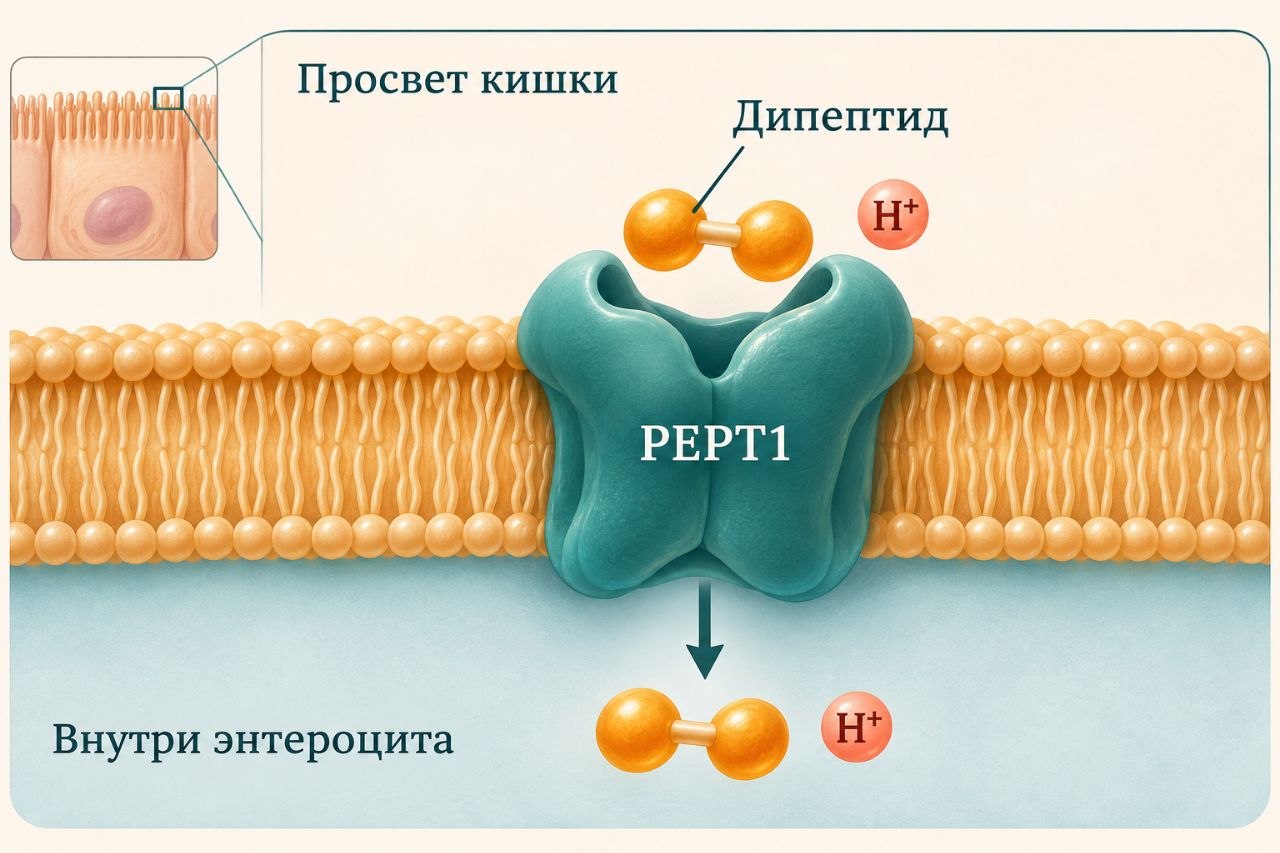
Пропускная способность PEPT1 соответствует его задаче. После еды к поверхности кишечника поступает сразу много коротких белковых фрагментов. Переносчик способен работать с большим потоком молекул разного состава. Более того, сама система всасывания приспосабливается к рациону. В опытах на крысах при повышении содержания белка в корме в тонкой кишке увеличивалось количество PEPT1 и усиливалось поглощение дипептидов [3].
Что происходит с пептидом после всасывания
Попадание в энтероцит — лишь первый этап. Чтобы достигнуть отдалённой ткани в исходном виде, пептиду предстоит сохранить последовательность аминокислот, покинуть кишечную клетку с противоположной стороны и попасть в кровоток. На каждом из этих этапов важны свойства конкретной молекулы.
Внутри энтероцита работают пептидазы — ферменты, способные разрывать связь между аминокислотами. Часть ди- и трипептидов быстро расщепляется. Образовавшиеся аминокислоты покидают энтероцит при участии своих переносчиков и пополняют общий запас, из которого организм, в частности, строит собственные белки. Другие последовательности дольше сохраняют целостность. Один из факторов такой устойчивости — расположение аминокислот на концах цепочки, с которых некоторые ферменты начинают расщепление [1, 4].
Разницу хорошо иллюстрирует сравнение четырёх коротких пептидов, обозначенных буквами KE, AEDG, KEDW и KEDA. Каждая буква здесь соответствует одной аминокислоте, а порядок букв показывает, как они соединены. Устойчивость молекул изучали в нескольких средах, в том числе в кислой среде и в образцах измельчённых тканей. В условиях опыта последовательности KEDW и KEDA сохраняли устойчивость к расщеплению в течение трёх-четырёх часов. Дипептид KE расщеплялся заметнее, а тетрапептид AEDG — в меньшей степени. Даже у цепочек одинаковой длины судьба оказалась разной [1].
Для понимания биологического действия существенно и то, какую именно часть пути удалось проследить в эксперименте. Устойчивость в образце ткани показывает, как молекула переносит воздействие ферментов в заданных условиях. Захват энтероцитом говорит о прохождении одной мембраны. Выход целого пептида через противоположную мембрану — отдельное событие. Для ряда устойчивых соединений этот участок пути изучен слабее, чем захват со стороны кишечника [1, 4].
Зачем почкам свой пептидный переносчик
В почках перед организмом стоит другая задача. При фильтрации крови небольшие растворённые молекулы попадают в первичную мочу. По мере её движения по почечным канальцам часть веществ возвращается в организм. Этот процесс называется обратным всасыванием, или реабсорбцией. В число веществ, которые почки способны таким образом сохранять, входят и короткие пептиды.
В начале проксимального канальца обнаруживается уже знакомый PEPT1. Дальше по ходу канальца большую роль играет родственный ему белок PEPT2. Он тоже переносит пептиды вместе с протонами, но отличается по рабочим свойствам. У PEPT1 выше пропускная способность. У PEPT2 выше сродство к целому ряду переносимых молекул — он эффективно связывает их даже при сравнительно низкой концентрации. В кишечнике особенно ценна способность справиться с большим количеством пептидов после еды. В почечном канальце важно захватить в том числе молекулы, которых в фильтрате осталось мало [1, 5].
Роль PEPT2 удалось проверить в опытах на мышах с выключенным геном этого переносчика. Учёные проследили за мечеными пептидными соединениями и обнаружили, что без работающего PEPT2 их обратное всасывание в почках резко снижалось. Так удалось установить физиологическую роль белка. От его присутствия в мембране действительно зависит, какая часть пептидных молекул вернётся из фильтрата в клетки почки [5].
Почему в мозге важно, на какой стороне клетки находится переносчик
PEPT2 обнаружили и в нервной системе. Особенно показателен пример сосудистых сплетений мозга. Это структуры, которые участвуют в образовании спинномозговой жидкости — ликвора. Их эпителиальные клетки разделяют две среды. Одна сторона клетки обращена к ликвору, другая — к ткани сплетения, где проходят кровеносные сосуды. Поэтому для понимания функции переносчика важно определить даже то, на какой поверхности одной и той же клетки он расположен.
В опытах на крысах PEPT2 выявили на стороне эпителиальных клеток, обращённой к ликвору. В таком положении белок может захватывать короткие пептиды из спинномозговой жидкости. Один из изученных примеров — карнозин, природный дипептид. Его поглощение исследовали на клетках сосудистых сплетений, а также на ткани мышей с выключенным геном PEPT2. Эти работы связывают переносчик с поддержанием состава жидкости, окружающей нервную систему [6, 7].
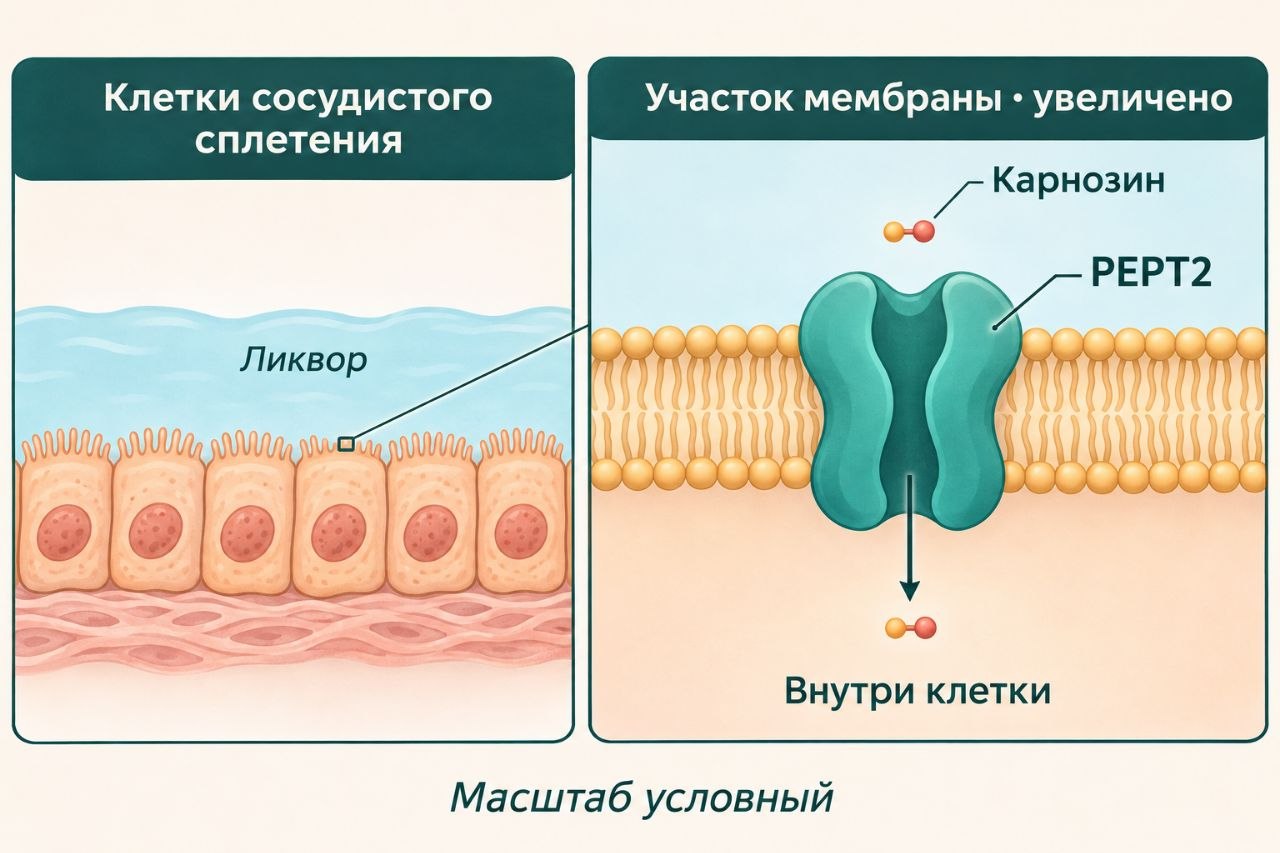
Здесь есть существенная анатомическая тонкость. Сосудистое сплетение и стенка мельчайшего кровеносного сосуда в ткани мозга — разные структуры. Захват пептида со стороны ликвора и доставка вещества из крови через гематоэнцефалический барьер идут разными путями. Расположение белка позволяет понять, в каком именно процессе он может участвовать [1, 6].
Сходную избирательность обнаружили в коже человека. PEPT2 выявили в кератиноцитах — основных клетках эпидермиса. При этом соседние типы клеток кожи отличаются по набору пептидных переносчиков. Поэтому даже выражение «пептид попадает в кожу» требует уточнения. Для изучения его действия имеет значение, какой слой и какие именно клетки способны его захватить [8].
Может ли переносчик аминокислот распознать целый пептид
PEPT1 и PEPT2 принадлежат к семейству протон-зависимых переносчиков пептидов. В него входят ещё два менее изученных белка, PHT1 и PHT2. Среди особенностей последних — способность распознавать также свободную аминокислоту гистидин. Для исследователей пептидной биорегуляции представляет интерес и обратный вопрос. Может ли белок, чья обычная задача состоит в переносе свободных аминокислот, распознать короткую цепочку из нескольких звеньев?
Один из кандидатов — LAT1, переносчик крупных нейтральных аминокислот. Среди его естественных субстратов есть лейцин, фенилаланин и триптофан. LAT1 работает по принципу обмена. Когда одна молекула аминокислоты перемещается внутрь клетки, другая выходит наружу. Родственный белок LAT2 также обменивает аминокислоты, но способен работать и с некоторыми более мелкими молекулами. Такие системы помогают регулировать состав доступных клетке аминокислот. LAT1 обнаружен, в частности, в клетках гематоэнцефалического барьера и в плаценте [1].
Чтобы выяснить, какие пептидные последовательности могут взаимодействовать с LAT1, Владимир Хавинсон, Наталья Линькова и их коллеги исследовали 27 биологически активных коротких пептидов. Они использовали молекулярный докинг — компьютерный метод, который позволяет поместить модель молекулы в участок связывания белка, перебрать её возможные положения и оценить, насколько благоприятны контакты между ними [1].
Размер молекулы — только одно из условий. Пептид должен расположиться так, чтобы его заряженные и незаряженные участки нашли подходящее химическое окружение внутри белка. Учитывается, где могут возникнуть водородные связи, как взаимодействуют электрические заряды, остаётся ли в полости достаточно свободного пространства. Поэтому добавление даже одной аминокислоты способно изменить результат.
У 20 из 27 пептидов расчёт показал высокую вероятность связывания с LAT1. Особенно благоприятные оценки получили три последовательности [1].
| Пептид | Последовательность | Из каких аминокислот состоит |
|---|---|---|
| Везилут | ED | Глутаминовая кислота — аспарагиновая кислота |
| Хонлутен | EDG | Глутаминовая кислота — аспарагиновая кислота — глицин |
| Пинеалон | EDR | Глутаминовая кислота — аспарагиновая кислота — аргинин |
У всех трёх молекул одинаковое начало. У Хонлутена к этой паре присоединён небольшой глицин, у Пинеалона — аргинин с объёмной положительно заряженной боковой группой. По расчётам обе молекулы смогли благоприятно расположиться в участке связывания LAT1. В числе потенциальных партнёров переносчика оказались и некоторые цепочки из четырёх аминокислот [1].
Что именно установлено таким способом? Моделирование показывает, для каких молекул связывание с LAT1 структурно возможно и какие из них особенно интересны для дальнейших экспериментов. Полный цикл переноса включает ещё изменение формы белка и высвобождение молекулы с другой стороны мембраны. Для подтверждения этого этапа нужно проследить за движением конкретного пептида. Поэтому результат «20 из 27» относится к вероятности связывания, а вопрос о переносе каждой из этих последовательностей через мембрану остаётся предметом исследования [1].
Как различаются оценки связывания для четырёх переносчиков
В 2023 году Владимир Хавинсон и коллеги расширили сравнение. Как одна и та же группа коротких пептидов взаимодействует с разными переносчиками? Исследователи рассчитали оценки связывания 26 биологически активных пептидов с четырьмя белками — LAT1, LAT2, PEPT1 и PEPT2. Для сравнения они выполнили те же расчёты для всех 8 400 возможных ди- и трипептидов, составленных из 20 стандартных аминокислот [11].
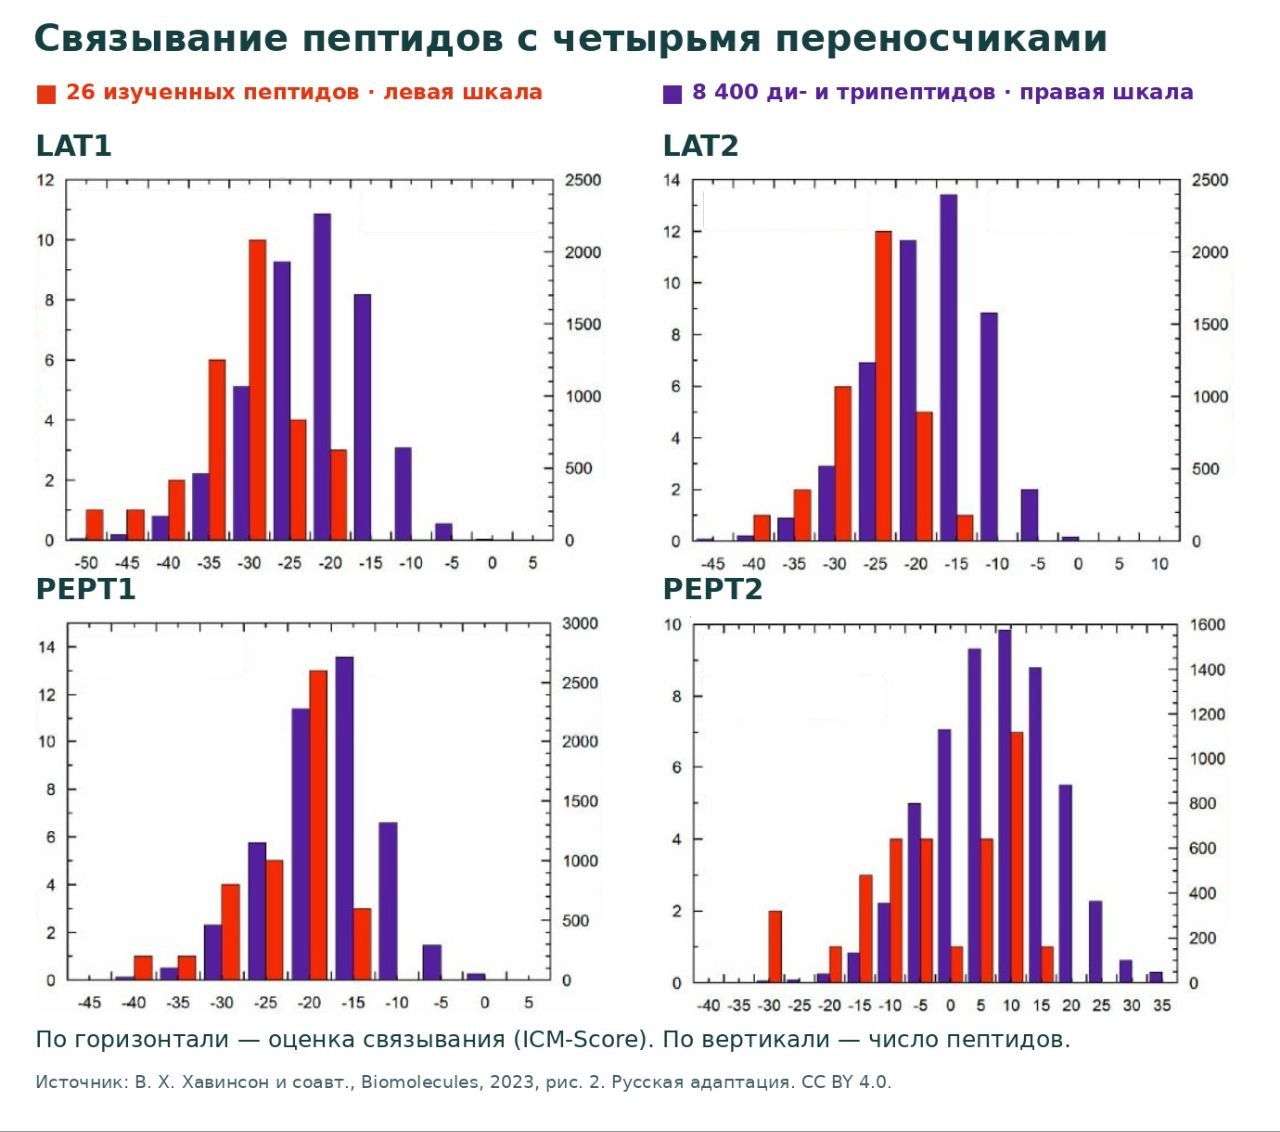
Особенно заметна разница между двумя родственными переносчиками. Для PEPT1 оценки всех 26 изученных пептидов лежат в отрицательной области шкалы, а для PEPT2 у части тех же молекул они переходят в положительную. В использованной модели более низкая оценка соответствует более благоприятному связыванию [11].
Как меняется транспорт пептидов с возрастом
Количество переносчиков и скорость их работы могут меняться в течение жизни. При этом у разных тканей есть свои возрастные особенности. Например, при изучении мозга крыс в коре у новорождённых выявили более высокий уровень PEPT2, чем у взрослых животных. Менялось и его распределение между клетками. В нейронах белок обнаруживали и у новорождённых, и у взрослых крыс, а в астроцитах — клетках, которые поддерживают работу нейронов, — его выявили у новорождённых [6].
Иную картину наблюдали в сердечной мышце. В исследовании Отмана Альгамди и коллег из оболочек клеток сердца крыс выделили мембранные пузырьки. Затем измерили, с какой скоростью они захватывают меченое производное дипептида β-аланил-лизина. Такой эксперимент позволяет оценить работу переносчика непосредственно на мембране. У животных среднего возраста максимальная скорость переноса была выше, чем у молодых взрослых. У старых животных она, напротив, оказалась самой низкой из трёх групп [9].
Для изучения возрастной пептидной регуляции это важное наблюдение. По одному только возрасту нельзя предсказать, ускорится или замедлится захват пептида. Ответ зависит от органа, типа клеток и периода жизни. И даже зная количество белка-переносчика, полезно отдельно измерять, с какой скоростью он действительно перемещает молекулы через мембрану.
Как транспорт связан с тканевой избирательностью пептидов
Под тканевой избирательностью понимают способность молекулы оказывать более выраженное действие в определённых клетках или тканях. Обычно этот вопрос возникает при обсуждении самого эффекта пептида. Однако часть ответа может определяться раньше — в тот момент, когда молекула ещё только взаимодействует с поверхностью клетки.
Чтобы короткий пептид проявил внутриклеточное действие, должны совпасть несколько условий. Последовательность должна достаточно долго сохраняться. На пути к ткани должен существовать способ преодолеть соответствующие барьеры. Наконец, на нужной стороне клеточной мембраны должен находиться белок, способный распознать и перенести эту молекулу. Уже внутри клетки значение приобретают её взаимодействия с другими молекулами. Для ряда ультракоротких пептидов изучается, в частности, взаимодействие с ДНК и белками, участвующими в организации генетического материала [1, 10].
Результаты моделирования LAT1 помогают понять и пределы такого объяснения. Среди исследованных последовательностей были пептиды, для которых описана тканеспецифическая активность, хотя расчётная вероятность связывания с LAT1 оказалась сравнительно низкой. В их числе — AE и KEDP, изучавшиеся в связи с регуляцией функций предстательной железы. Значит, присутствие одного переносчика само по себе ещё не объясняет весь путь молекулы. Для разных последовательностей могут иметь значение другие транспортные белки, устойчивость к ферментам и собственные внутриклеточные мишени [1].
Так за общим выражением «пептид проникает в клетку» обнаруживается целая физиология. В кишечнике один переносчик помогает усвоить множество фрагментов пищевого белка. В почках другой улавливает короткие цепочки, которые организм иначе потерял бы с мочой. В сосудистых сплетениях тот же белок участвует в обмене пептидов между клетками и окружающим мозг ликвором. А для Хонлутена, Пинеалона и ряда других пептидных биорегуляторов молекулярные расчёты указывают ещё на один возможный путь взаимодействия с мембраной — через LAT1. Понять действие конкретного пептида помогает точный вопрос: в каком виде, через какую мембрану и в какую клетку он способен попасть?
Научные источники
- Khavinson V. et al. Transport of Biologically Active Ultrashort Peptides Using POT and LAT Carriers. International Journal of Molecular Sciences. 2022. Vol. 23. Art. 7733.
- Killer M. et al. Structural snapshots of human PepT1 and PepT2 reveal mechanistic insights into substrate and drug transport across epithelial membranes. Science Advances. 2021. Vol. 7. Art. eabk3259.
- Shiraga T. et al. Cellular and molecular mechanisms of dietary regulation on rat intestinal H+/peptide transporter PepT1. Gastroenterology. 1999. Vol. 116. P. 354–362.
- Shen W., Matsui T. Intestinal absorption of small peptides: a review. International Journal of Food Science & Technology. 2019. Vol. 54. P. 1942–1948.
- Rubio-Aliaga I. et al. Targeted disruption of the peptide transporter Pept2 gene in mice defines its physiological role in the kidney. Molecular and Cellular Biology. 2003. Vol. 23. P. 3247–3252.
- Shen H. et al. Immunolocalization of the proton-coupled oligopeptide transporter PEPT2 in developing rat brain. Molecular Pharmaceutics. 2004. Vol. 1. P. 248–256.
- Teuscher N. S. et al. Carnosine uptake in rat choroid plexus primary cell cultures and choroid plexus whole tissue from PEPT2 null mice. Journal of Neurochemistry. 2004. Vol. 89. P. 375–382.
- Kudo M. et al. H(+)/peptide transporter (PEPT2) is expressed in human epidermal keratinocytes and is involved in skin oligopeptide transport. Biochemical and Biophysical Research Communications. 2016. Vol. 475. P. 335–341.
- Alghamdi O. et al. Effect of ageing and hypertension on the expression and activity of PEPT2 in normal and hypertrophic hearts. Amino Acids. 2021. Vol. 53. P. 183–193.
- Khavinson V. K. et al. Peptide Regulation of Gene Expression: A Systematic Review. Molecules. 2021. Vol. 26. Art. 7053.
- Khavinson V. K., Linkova N. S., Rudskoy A. I., Petukhov M. G. Feasibility of Transport of 26 Biologically Active Ultrashort Peptides via LAT and PEPT Family Transporters. Biomolecules. 2023. Vol. 13. Art. 552.